
Pflanzenporträt
Cuscuta australis
Cuscuta australis
Cuscuta australis verbindet sich als Parasit mit anderen Pflanzen und kann von ihnen ein Protein der Blühsteuerung übernehmen. Daraus folgt jedoch nicht, dass ihr jede eigene Blühregulation fehlt. Untersuchungen von 2020 und 2024 trennen Proteinimport, gewebespezifische Eigenexpression und tatsächliche Abhängigkeit voneinander.
Diese Pflanze vergleichen ↗
Akzeptierter Artname und sechs Ränge nach Kew; die weit gefasste Klasse Equisetopsida folgt dem bestehenden Lexikonrahmen. Weitere Zwischenränge sind ausgelassen.
Auf einen Blick
- Größe
- Stängel bis 0,5 mm dick; Blüten in der Flora Zambesiaca 2–3 mm lang und breit. Diese Maße bezeichnen keine gesamte Sprosslänge.M.L. Gonçalves · Flora Zambesiaca 8(1), via Kew B. Verdcourt · Flora of Tropical East Africa, via Kew
- Wuchsform
- Einjährige parasitische Windepflanze mit sehr dünnen gelben bis rötlich orangefarbenen, verflochtenen Sprossen ohne entwickelte Laubblätter.Royal Botanic Gardens, Kew · Plants of the World Online H. Heine · Flora of West Tropical Africa 2, via Kew
- Lebensraum
- In den afrikanischen Florabehandlungen häufig auf Sumpfvegetation; die ostafrikanische Flora nennt Vorkommen in 960–2.100 m Höhe.B. Verdcourt · Flora of Tropical East Africa, via Kew H. Heine · Flora of West Tropical Africa 2, via Kew
- Verbreitung
- Alte Welt bis Australien nach Kew, also Teile Europas, Afrikas, Asiens und Australiens.Royal Botanic Gardens, Kew · Plants of the World Online
- Fortpflanzung
- Kleine weiße Blüten in lockeren bis dichten Gruppen; kugelige bis etwas umgekehrt birnenförmige Kapseln mit ellipsoiden bis eiförmigen Samen.H. Heine · Flora of West Tropical Africa 2, via Kew M.L. Gonçalves · Flora Zambesiaca 8(1), via Kew B. Verdcourt · Flora of Tropical East Africa, via Kew
- Besonderheit
- In Versuchssystemen wurde Wirts-FT-Protein im Parasiten nachgewiesen; spätere Untersuchungen fanden zugleich eigene CaFT-RNA in Haustorien.Shen et al. · Proceedings of the National Academy of Sciences Mäckelmann et al. · Plant Communications
Ein fremdes Signal an einer lebenden Verbindung
Die dünnen Sprosse von Cuscuta australis umwinden andere Pflanzen. An den Kontaktstellen entstehen Haustorien: Organe, über die sich der Parasit mit dem Wirt verbindet. Diese Verbindung dient der Versorgung und kann auch einen Austausch von Molekülen ermöglichen. Damit stellt sich bei der Blütenbildung eine besondere Frage: Orientiert sich der Parasit an einem Signal, das seine Wirtspflanze liefert?
Ein möglicher Signalträger ist das Protein FT, benannt nach FLOWERING LOCUS T. FT-Proteine gehören bei vielen Pflanzen zu einem System, das den Übergang zur Blüte mitsteuert. Ein über die Verbindung eingewandertes Wirtprotein könnte deshalb mehr sein als ein beliebiger fremder Bestandteil. Es könnte in die Entwicklungsregulation des Parasiten eingreifen.
Eine Studie von 2020 lieferte dafür konkrete Importbelege. Spätere Untersuchungen änderten jedoch die Einordnung einer weitergehenden Behauptung: Der Nachweis eines fremden Proteins ist nicht automatisch der Nachweis, dass die Pflanze ausschließlich auf dieses angewiesen ist.
Shen et al. · Proceedings of the National Academy of Sciences Mäckelmann et al. · Plant CommunicationsWie sich Proteinimport von eigener Herstellung unterscheiden lässt
Das Team von 2020 nutzte unter anderem Wirtspflanzen, in denen ein FT-Protein zusammen mit einem nachweisbaren GFP-Anteil gebildet werden konnte. In einem entsprechend gesteuerten Tabaksystem ließ sich das markierte Protein später im Parasiten nachweisen. Die zugehörige fremde RNA wurde dort dagegen nicht nachgewiesen. Dieses Nebeneinander war aufschlussreich: Es passte zur Übertragung des Proteins und nicht bloß zu der Annahme, der Parasit habe die fremde Bauanleitung erhalten und das markierte Protein selbst hergestellt.
In einem weiteren Ansatz wurden aus Sojabohnen stammende FT-Peptide im Parasiten identifiziert. Ergänzende molekulare Versuche prüften, ob Wirt-FT mit einem untersuchten Cuscuta-Partnerprotein namens FD zusammenwirken konnte. Diese Befunde verbanden den Import mit einer möglichen Rolle in der Blühsteuerung.
Die Nachweise leisten dabei Verschiedenes. Ein Protein im Parasiten zu finden zeigt seine Anwesenheit. Eine Wechselwirkung mit einem Partnerprotein zeigt eine mögliche molekulare Anschlussfähigkeit. Beides zusammen ist stärker als eine bloße Gleichzeitigkeit der Blüte. Es beweist aber noch nicht, dass kein eigener oder anderer übertragener Signalweg zusätzlich beteiligt sein kann.
Shen et al. · Proceedings of the National Academy of SciencesWas veränderte Wirte über die Blüte verraten
Die Arbeit von 2020 veränderte auch die FT-Ausstattung der Wirte. Eine stärkere Bildung eines FT-Gens in Sojabohnen war mit früherer Blüte von Wirt und C. australis verbunden. In einem anderen Versuch mit Tabak, dessen betreffendes FT5-Gen funktionslos gemacht worden war, blieb die Blüte des Parasiten im langen Beobachtungszeitraum aus. Solche Eingriffe gehen über eine einfache Korrelation hinaus: Die genetische Veränderung des Wirts beeinflusste die beobachtete Entwicklung.
Dennoch gehört zu jedem Ergebnis die genaue Kombination aus Wirt, Parasit, Gen und Wachstumsbedingungen. Ein unter einer bestimmten Kombination ausbleibendes Blühen ist nicht von sich aus ein Beweis, dass alle C.-australis-Pflanzen auf jedem Wirt ausschließlich dessen FT benötigen. Bereits die damalige Diskussion ließ weitere Wirtssignale und eine möglicherweise gewebespezifische eigene FT-Expression offen.
Gerade der letzte Punkt war wichtig. In den damals untersuchten Spross- und frühen Entwicklungsproben war die eigene CaFT-RNA nicht nachgewiesen worden. Das ist ein Befund über die genommenen Proben und die Nachweisbedingungen. Er ist nicht gleichbedeutend damit, dass in keinem anderen Gewebe jemals eine solche RNA entsteht.
Shen et al. · Proceedings of the National Academy of SciencesDas Haustorium verändert den Blick auf die Eigenregulation
Eine 2024 veröffentlichte Untersuchung suchte gezielt in unterschiedlichen Geweben. Bei C. australis auf Sojabohnen wurde CaFT-RNA in den Haustorien gefunden. Ein FD-ähnlicher Partner war breiter über die Gewebe verteilt nachweisbar. Für die Proben von der Kontaktstelle prüfte das Team auch eine mögliche Verunreinigung mit Wirtsmaterial: Die verwendeten Primer lieferten mit Wirtsvorlagen keine entsprechenden Amplifikate. Das stützte die Zuordnung zur parasitischen Pflanze.
Die Arbeit prüfte zudem die Verarbeitung der RNA und die daraus abgeleiteten Proteinsequenzen. Die vorhergesagte CaFT-Aminosäuresequenz stimmte mit der eines untersuchten FT-Proteins von Cuscuta campestris überein. Bei dieser verwandten Art gelangen weitere Funktionstests: Sie blühte auf Tabakpflanzen, deren zwei wichtige blühfördernde FT-Gene funktionslos gemacht worden waren. C.-campestris-FT-Gene konnten außerdem die Blüte in solchen Tabakpflanzen wieder ermöglichen.
Die Artzuordnung dieser Versuche ist entscheidend. Der Wirts-Knockout-Versuch und die funktionelle Ergänzung mit C.-campestris-Genen sind keine Ausschaltung des eigenen CaFT-Gens in C. australis. Die Sequenzübereinstimmung und der gewebespezifische Nachweis sind wichtige Verbindungen zwischen den Befunden, ersetzen aber keinen solchen artgleichen Verlustversuch. Auch die verwendeten Expressionskonstrukte und Bedingungen unterschieden sich von früheren Tests.
Damit wurde die Vorstellung eines grundsätzlich fehlenden eigenen FT-Systems deutlich eingegrenzt. Gleichzeitig blieb offen, wie stark eigenes und eingewandertes FT unter verschiedenen natürlichen Wirt-Parasit-Kombinationen jeweils zur Blüte beitragen.
Mäckelmann et al. · Plant CommunicationsÜbernehmen und abhängig sein sind zwei verschiedene Fragen
Die spätere Untersuchung löscht den früheren Importnachweis nicht aus. Eine parasitische Pflanze kann fremde Proteine erhalten und trotzdem eigene Bestandteile derselben Regulationsaufgabe besitzen. Um ihre Beiträge zu verstehen, müssen Herkunft, Ort der Expression, Funktion und Wirkung auf die ganze Pflanze getrennt geprüft werden.
An Cuscuta australis lässt sich deshalb eine wissenschaftliche Erklärung beim Präziserwerden verfolgen. Aus einem auffälligen Gleichlauf der Blüte wird zunächst eine prüfbare Idee zum Proteintransfer. Der Import lässt sich nachweisen; für die Behauptung vollständiger Abhängigkeit sind zusätzliche und anders angelegte Tests nötig. Die Suche in einem zuvor nicht entscheidend berücksichtigten Gewebe eröffnet dabei eine neue Möglichkeit.
Wie Wirtssignale und Eigenregulation zusammenspielen, ist damit noch nicht abschließend geklärt. Die belastbare Erkenntnis ist dennoch weitreichend: Selbst eine eng an eine andere Pflanze angeschlossene Lebensweise erlaubt keine einfache Gleichsetzung von fremder Versorgung und vollständig fremdgesteuerter Entwicklung.
Shen et al. · Proceedings of the National Academy of Sciences Mäckelmann et al. · Plant CommunicationsWeitere Pflanzen
Pflanzenporträt
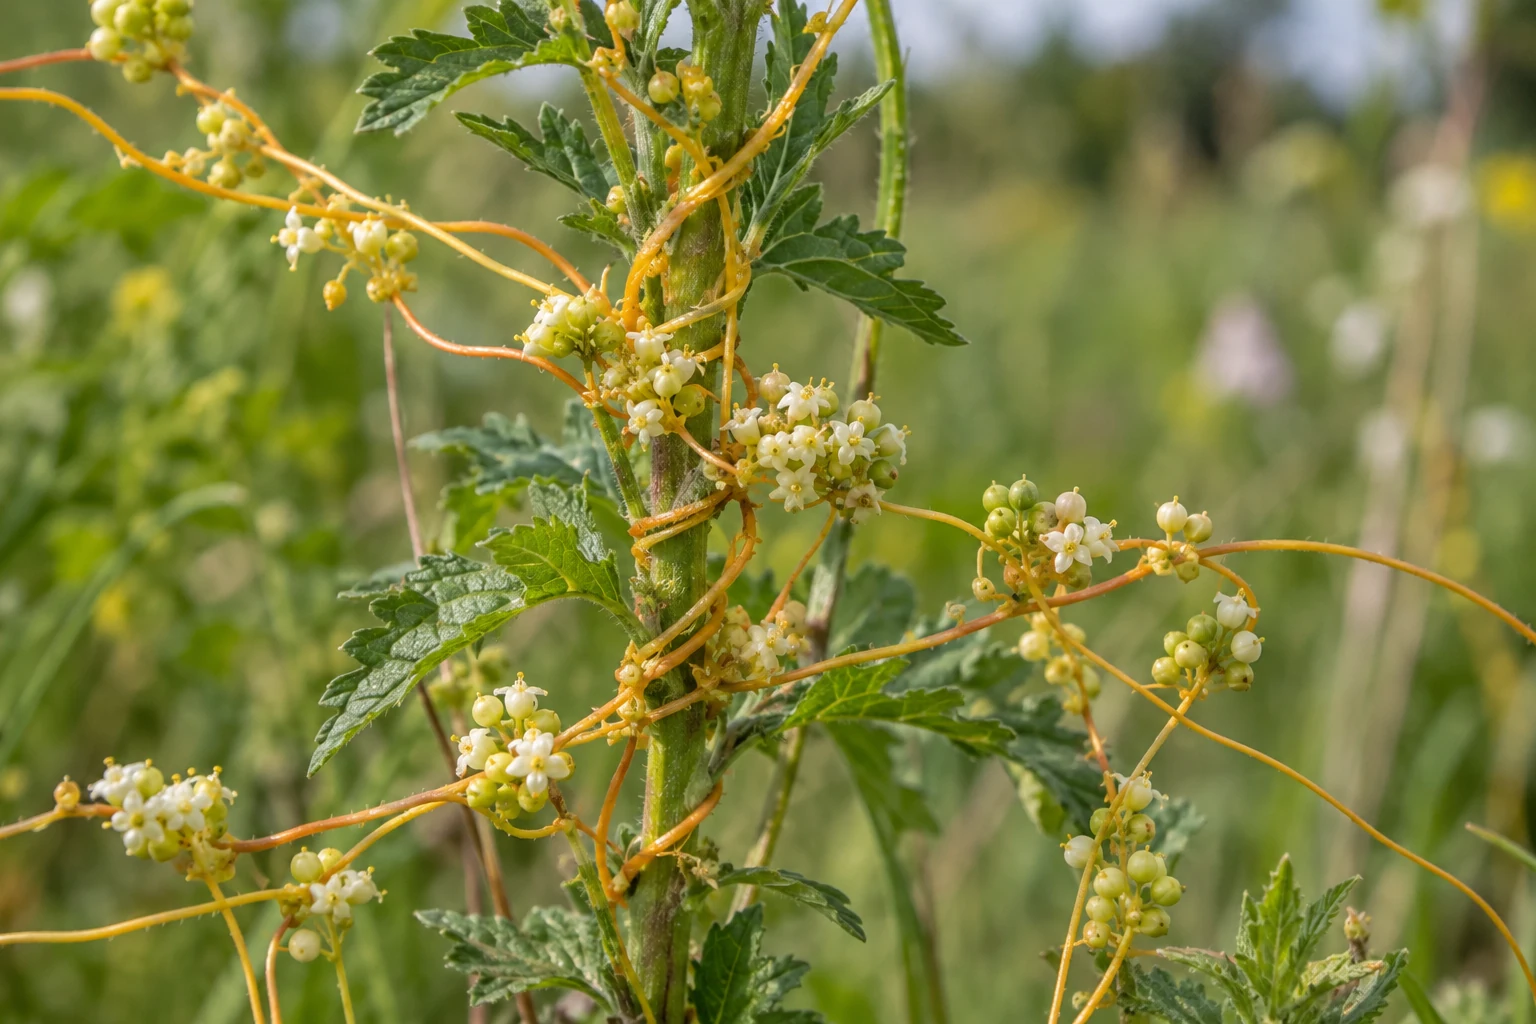
Acker-Seide
Die orangefarbenen Fäden der Acker-Seide umwinden andere Pflanzen und beziehen ihre Versorgung über eingewachsene Kontaktorgane. Doch Umklammern, Eindringen und Anschließen an eine Wasserleitung sind verschiedene Schritte. Versuche an dieser Art zeigen, wie Licht und Berührung die Vorbereitung auslösen – und weshalb für den fertigen Anschluss noch ein Signal des Wirts nötig ist.
Entdecken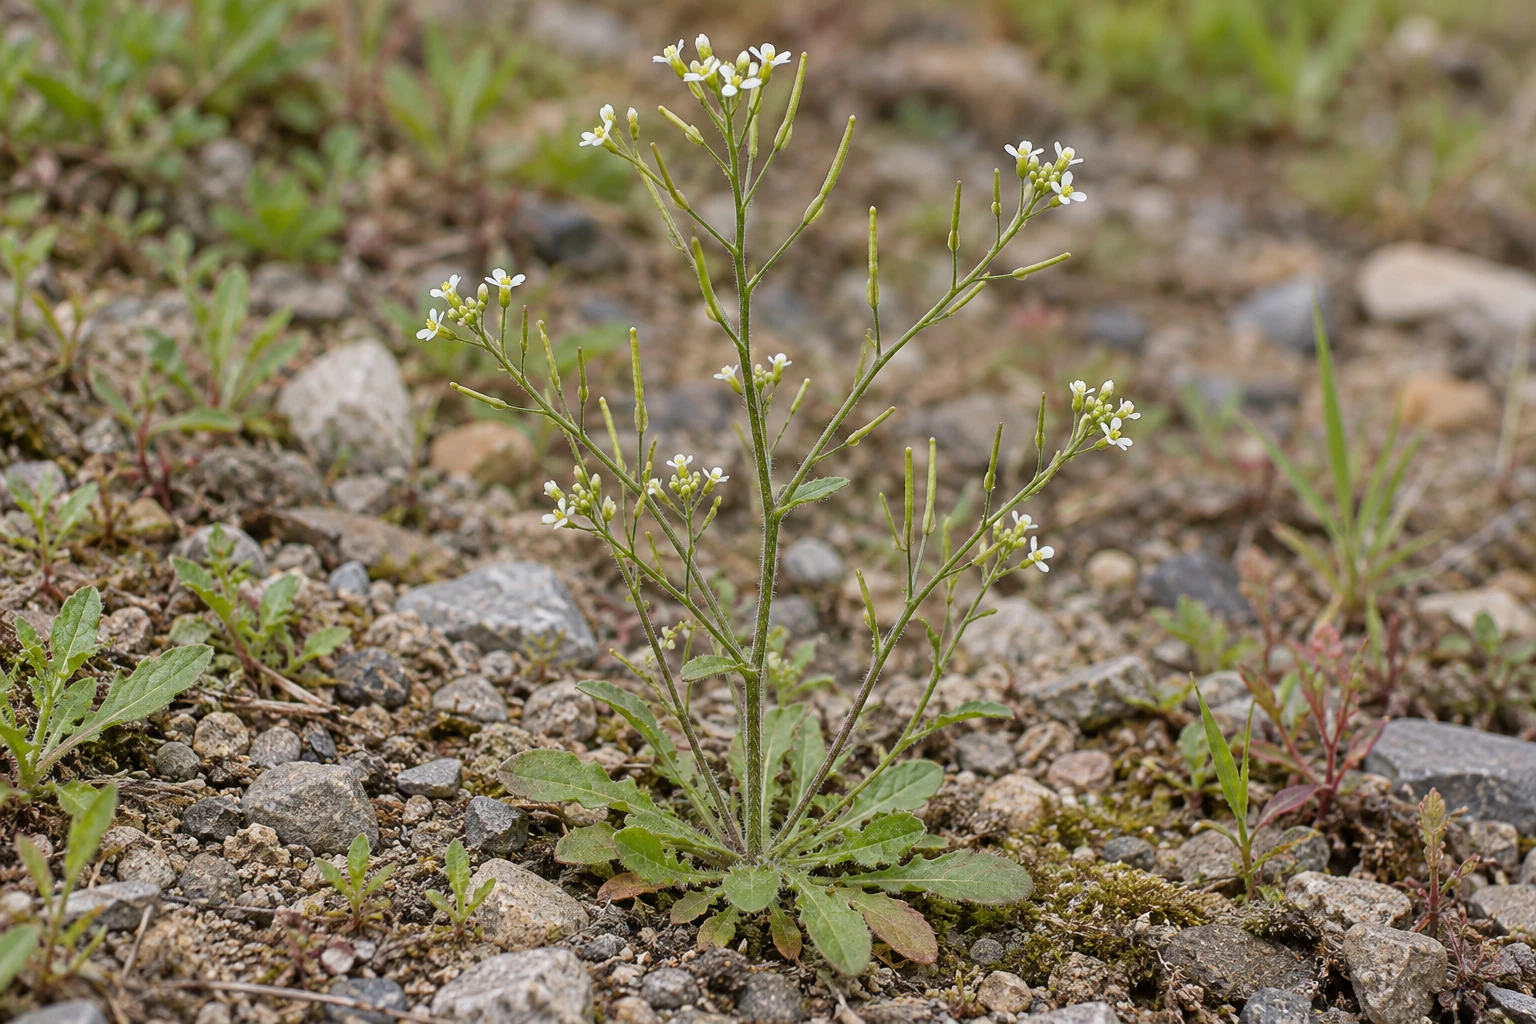
Pflanzenporträt
Acker-Schmalwand
Eine überwinternde Acker-Schmalwand kann nach Wochen der Kälte anders auf den Frühling reagieren als zuvor. Ein wichtiger Grund ist die Stilllegung einer genetischen Blühbremse. Dieser Zustand bleibt nach dem Winter erhalten, wird aber für die nächste Generation normalerweise zurückgesetzt.
EntdeckenQuellen und Bildnachweis
Stand: 2026-10-31
- Cuscuta australis · akzeptierter Artname und botanische Einordnung · Royal Botanic Gardens, Kew · Plants of the World Online · abgerufen 2026-10-31
- Cuscuta australis (dodder) parasite eavesdrops on the host plants’ FT signals to flower (2020) · Shen et al. · Proceedings of the National Academy of Sciences · abgerufen 2026-10-31
- Gene complementation analysis indicates that parasitic dodder plants do not depend on the host FT protein for flowering (2024) · Mäckelmann et al. · Plant Communications · abgerufen 2026-10-31
- M.L. Gonçalves 1987, Cuscutaceae, Flora Zambesiaca 8(1) · M.L. Gonçalves · Flora Zambesiaca 8(1), via Kew · abgerufen 2026-10-31
- B. Verdcourt 1963, Convolvulaceae, Flora of Tropical East Africa · B. Verdcourt · Flora of Tropical East Africa, via Kew · abgerufen 2026-10-31
- H. Heine 1963, Convolvulaceae, Flora of West Tropical Africa 2 · H. Heine · Flora of West Tropical Africa 2, via Kew · abgerufen 2026-10-31
Bild: KI-generierte, fotorealistische Darstellung für Wissenschaftswelle; keine dokumentarische Aufnahme.